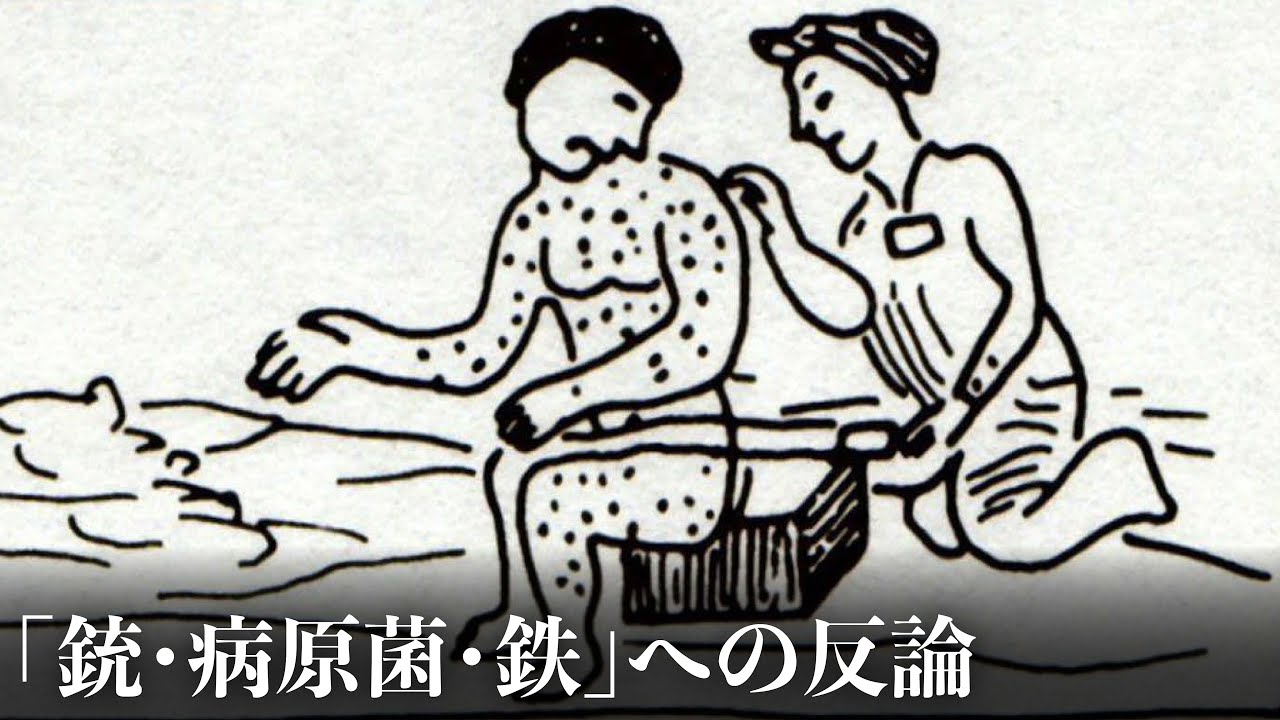
コロンブスがアメリカ大陸に到達した1492年当時、そこには数百万から数千万とも推計される先住民が独自の文明を築いていた。しかしヨーロッパ人の入植が始まると、インカ、マヤ、アステカといった高度な文明は短期間で崩壊し、先住民の9割以上がわずか数百年で命を落としたとされる。同じような悲劇はオーストラリアや太平洋の島々でも繰り返された。
なぜユーラシアの人々が常に征服者となり得たのか。この問いに対し、ジャレド・ダイヤモンド氏は著書『銃・病原菌・鉄』で「銃(軍事技術)」「病原菌(感染症)」「鉄(金属技術)」の三要素を挙げ、中でも「病原菌」こそが最大の決め手だったと論じた。この「未開地流行説(virgin soil epidemic)」は長らく通説とされてきたが、刊行から20年以上を経た現在、考古学・遺伝学・歴史学の複数の分野から、単純な免疫の有無では説明しきれない複雑な実態が浮かび上がっている。
ダイヤモンドの論理:地理・農耕・免疫の連鎖
ダイヤモンド氏の説明を整理すると、以下の連鎖になる。
- 肥沃な三日月地帯で農耕が始まり、食料生産が安定した。
- 人口増加と社会階層の分化が進み、専門職(職人・学者・支配層)が生まれ、技術・文字・宗教が発達した。
- ユーラシア大陸は東西に長く、同一気候帯が連続するため、農耕技術や家畜が東西に容易に拡散した。
- 家畜(牛・豚・羊など)との密接な共生により、人獣共通感染症(天然痘・麻疹・インフルエンザ・結核など)が繰り返し流行した。
- 高い人口密度の都市で疫病が蔓延し、生き残った人々は獲得免疫と、世代を経た自然淘汰による遺伝的抵抗力を獲得した。
- 一方、アメリカ大陸は南北に長く、気候帯が遮断されるため農耕・家畜の拡散が限定的だった。家畜化可能な大型哺乳類も少なく、人獣共通感染症への曝露機会が乏しかった。
- 結果として、ヨーロッパ人が持ち込んだ病原体に対し、先住民は「免疫の空白(virgin soil)」状態で直面し、壊滅的な被害を受けた。
この枠組みは、軍事力や政治組織の差だけでは説明できない「少数の征服者が多数の被征服者を制圧した」事実を、生物学的・地理的要因で補完する説得力を持っていた。
免疫の仕組みと「遺伝的強さ」の罠
しかし、近年の免疫学的知見は「免疫がなかったから死んだ」という一言の背後にある複雑さを浮き彫りにする。免疫には大きく分けて「自然免疫(生まれつきの第一防壁)」と「獲得免疫(感染やワクチンで学習する第二防壁)」がある。獲得免疫は後天的であり、親が獲得した免疫は子供に遺伝しない。
ダイヤモンド氏は、ユーラシアでは疫病に強い遺伝子を持つ個体が生き残り、弱い個体が淘汰される自然選択が何百世代も繰り返された結果、集団レベルで遺伝的抵抗力が高まったと推論する。実際、アマゾンのヤノマミ族が結核に高感受性を示すことや、カナダの一部先住民集団で特定遺伝子型により疾患発症リスクが他民族の10倍になるとの報告もあり、遺伝的感受性の差を示唆するデータは存在する。
だが、ここに大きな時間の壁がある。ヨーロッパに麻疹や天然痘が定着したのは2〜3世紀頃、大規模なパンデミック(黒死病など)が記録されるのは14世紀以降だ。コロンブス到達はその約150年後。数千年・数百世代単位で作用する自然淘汰が、わずか数十世代で集団の遺伝的プロファイルを劇的に変化させ得るかは、人口遺伝学の観点から極めて疑わしい。
「免疫の空白」を埋める社会・構造的要因
では、なぜ先住民はそれほど脆弱だったのか。最新の学際的研究は、生物学的要因だけでなく、植民地化に伴う社会構造の激変が疫病の被害を増幅させたことを指摘する。
- 強制労働・移住・食糧難:エンコミエンダ制(強制労働制度)や鉱山労働、伝統的生業の破壊による栄養不良は、自然免疫・獲得免疫の両方を機能不全に陥れる。
- 社会システムの崩壊:指導層・医療・儀礼・相互扶助ネットワークが同時多発的に失われ、看護・隔離・葬送といった感染制御機能が麻痺した。
- 複数疾患の同時・連続流行:天然痘だけでなく、麻疹・インフルエンザ・百日咳・ジフテリア・マラリア・黄熱病などが短期間に波状的に襲い、回復期のない「シンデミック(複合流行)」状態を生んだ。
- 意図的・非意図的な拡散経路:交易路・伝道活動・軍事行動が病原体の高速輸送網となり、孤立集落まで一気に到達させた。
これらは「免疫の有無」という静的な生物学的条件ではなく、植民地支配という動的な政治・経済・社会プロセスが生み出した脆弱性である。一部の歴史家は、疫病そのものよりも「疫病後の社会再生能力を剥奪されたこと」こそが人口崩壊の決定打だったと論じる。
遺伝的決定論への警戒と多因子モデルの必要性
「先住民は遺伝的に病気に弱かった」という説明は、植民地支配の暴力性・構造的暴力を「生物学的必然」に還元し、加害者側の責任を曖昧にするリスクを孕んでいる。実際、同じ病原体に曝露しても、栄養状態が良く社会支援がある集団では死亡率が著しく低かった記録も残る。
一方で、「免疫の差はまったく無関係だった」と断じることもまた単純化だ。HLA(白血球抗原)多型の多様性がユーラシア集団で広いことは、長期的な病原体選択圧の痕跡として妥当に解釈できる。重要なのは、遺伝的要因を「決定的な主因」ではなく「複数の脆弱性要因の一つ」として位置づけ、社会・環境・歴史的条件との相互作用の中で検証する多因子モデルへ移行することだ。
残された問いと今後の視点
現在、古代DNA解析・古病理学・植民地期文書のデジタル化・計算機シミュレーションなどを組み合わせ、地域ごと・時期ごとの実態を再構築する試みが進んでいる。例えば、メキシコ中央高地では1520年の天然痘流行後も人口が一時回復し、1545・1576年の「ココリツリ流行(サルモネラ・エンテリカ由来と推定)」で再び壊滅的打撃を受けたことが、氷床コアや歯牙DNAから裏付けられつつある。
「病原菌が最大の武器だった」という命題は、事実としての感染症のインパクトを指す限り正しい。しかし、それを「地理的運命」や「遺伝的劣位」による一方的な帰結として完結させるとき、そこには植民地主義の構造的暴力が見えなくなる。免疫という生物学的メカニズムと、それを無力化した社会・政治的プロセスを分けて考え、両者の接点を丁寧に描き直すことこそが、過去の悲劇から現代の感染症対策や健康格差是正へつながる教訓を引き出す道筋になるだろう。